※この記事にはアフィリエイト広告を含みます。
問1(直立二足歩行)
胴体を起こし、二本の脚で体を支えて移動する、人類系統の重要な特徴となった歩行様式は何ですか。約700万年前までさかのぼるアフリカの最古級の化石でも、その可能性が研究されています。
問2(アウストラロピテクス・アファレンシス)
約385万〜295万年前の東アフリカに生息し、エチオピアで発見された化石「ルーシー」などで知られる、直立二足歩行を行っていた代表的な初期人類の学名は何ですか。
答えと解説
問1の答えは直立二足歩行、問2はアウストラロピテクス・アファレンシス(アファール猿人)です。アファレンシスは約385万〜295万年前の東アフリカに生息し、約320万年前のルーシーの骨格が、その体つきを具体的に伝えています。
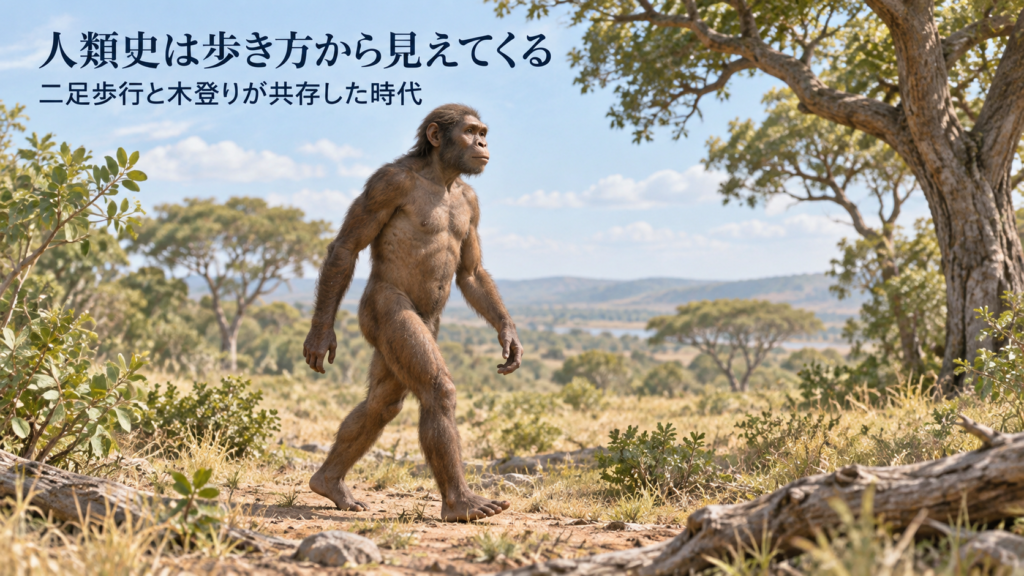
二足歩行は、大きな脳が発達するより早い段階で、人類系統の重要な特徴として現れました。 アファレンシスには地上を二本脚で歩く特徴と、木登りに適した特徴が備わっていました。骨・足跡・歯を手掛かりに、その身体と暮らしを見ていきましょう。
深掘り|約700万年前の化石から歩行を探る
現生人類とチンパンジー・ボノボは、共通祖先から分かれたそれぞれの系統に属します。分子遺伝学の研究では、人類とチンパンジーの系統の分岐は、おおむね800万〜600万年前と推定されています。
この時期に近い初期人類として知られるのが、アフリカ中西部のチャドで見つかったサヘラントロプス・チャデンシスです。年代は約700万〜600万年前。頭蓋骨の底にある大後頭孔、つまり脊髄が頭蓋から出る穴の位置から、早くから直立姿勢との関係が論じられてきました。
さらに2022年には、同じ化石産地から得られた大腿骨と尺骨の分析が発表されました。研究では、大腿骨の特徴は日常的な二足歩行と整合し、腕の骨には樹上活動の痕跡があると報告されています。地上で二足移動をしながら、木の上も利用する。後の初期人類にも通じる組み合わせです。
サヘラントロプスの歩行には、研究者の見解が分かれています。2024年の再分析は大腿骨から日常的な二足歩行を支持する証拠を認めず、2026年の分析は骨の比率や股関節・膝に関わる特徴から二足歩行を支持しました。化石資料が限られるため、歩行の具体的な様式には議論が続いています。
最初期の化石を調べる研究者は、頭蓋骨、脚の骨、腕の骨を比べ、姿勢と移動方法を復元します。残っている部位や分析方法によって、確かめられることが変わります。後の初期人類にも、地上での二足移動と樹上活動を組み合わせた身体の特徴が見つかっています。
直立二足歩行は何を変えたのか
直立二足歩行とは、胴体を起こし、二本の脚で体重を支えながら移動する歩き方です。現生の類人猿にも、一時的に二本脚で立ったり歩いたりする行動はあります。人類系統で重要なのは、二足歩行が日常的な移動方法として身体の構造に組み込まれていったことです。
二足歩行には、骨盤、大腿骨、膝、足首、足など、全身の構造が関わります。一歩進むたびに片脚が体重を支えるため、身体を支持脚の上へ移しながらバランスを保つ必要があります。アウストラロピテクス類の化石では、骨盤や大腿骨、足の形が、地上で体重を支えて歩く能力を示しています。
二足歩行の証拠は、確実な石器製作の証拠より古い時代へさかのぼります。二足歩行で手を移動以外に使いやすくなったことは、その後の運搬や道具の利用を考える手掛かりです。歩行の発達と道具製作は、それぞれの化石・遺物を年代へ置いてたどれます。
一歩の中には、片脚で身体を支える時間がある
歩行では、左右の脚が交代で身体を支えます。片方の足を前へ運んでいる間、もう片方の足には体重がかかり、骨盤が横へ大きく傾かないようにする必要があります。二本脚で立つ姿勢と、二本脚で歩き続ける動作には、このような支持とバランスの課題があります。
股関節の周囲では、骨盤に付く筋肉が身体を支えます。骨盤が短く幅広くなること、太ももの骨が膝へ向けて内側へ傾くことは、足を身体の下へ置き、片脚で支えやすくする形と関係します。骨盤、大腿骨、膝を一つの仕組みとして比べると、骨の形が歩行の証拠になる理由が具体的になります。
移動に前肢を使う割合が減ることも、活動の組み合わせを変えます。食物を取った場所から別の場所へ運ぶ、低い枝に手を伸ばす、子を支えるなど、手の働きと移動を併せて考えられます。こうした機能上の利点は、二足歩行の成立過程を研究する際の論点です。どの利点がどの段階で重要だったかは、化石の環境や身体の特徴から検討されています。
骨と筋肉を、三次元のモデルで組み合わせる
2023年、アシュリー・ワイズマンは、ルーシーの骨盤と下肢に付く筋肉を三次元で復元する研究を発表しました。骨のスキャンと現生人類の筋肉の情報を使い、各脚の36筋をモデルに組み込みました。筋肉が骨のどこに付き、関節の周囲をどの経路で走るかを調べると、関節を動かす力の働きを検討できます。
研究は、ルーシーが膝を伸ばした直立姿勢をとれた可能性を支持しました。同時に、下肢で行える動作には、日常的な地上の二足歩行以外の動きも含まれるとしています。骨だけで読める形の特徴に、筋肉の働きを加えて歩行を探る研究例です。
筋肉の配置は、骨と比較資料から復元されています。この研究が直接検討したのは直立姿勢と筋肉の力学であり、歩行の効率や一日の移動距離を求めるには、さらに動作の解析が必要です。
アウストラロピテクス・アファレンシスが見せる「地上と樹上」の両方
問2のアウストラロピテクス・アファレンシスは、約385万〜295万年前の東アフリカに生息していました。化石はエチオピア、ケニア、タンザニアで見つかっています。日本語では「アファール猿人」と呼ばれることもあります。
この種が重要なのは、直立二足歩行の証拠と、木登りに適した特徴を同じ身体の中に持っていたからです。長く強い腕や曲がった指は樹上活動に向きます。一方で、骨盤や大腿骨、足には二本脚での歩行に適した特徴がありました。
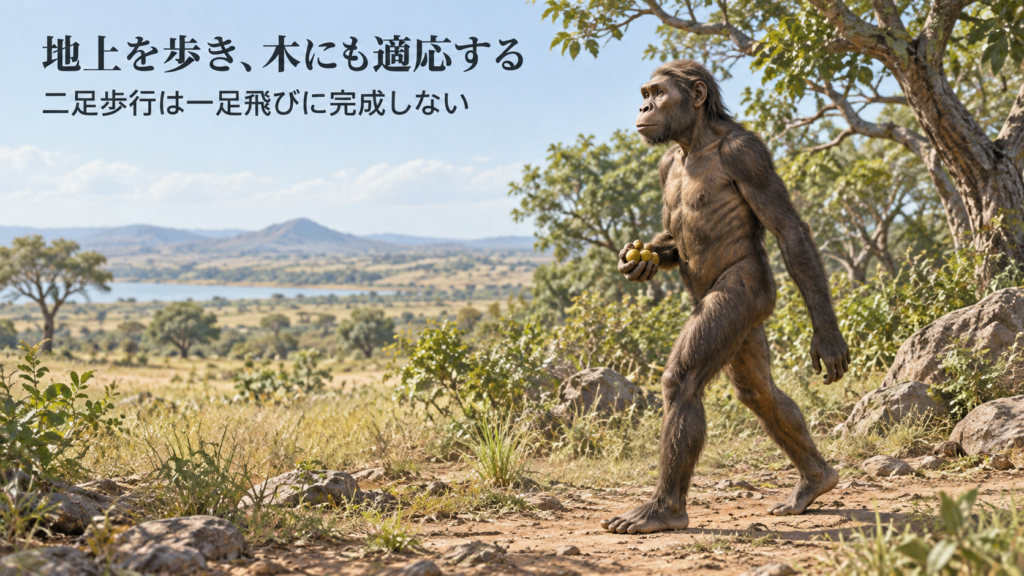
ディキカの子どもの肩にも、樹上活動の手掛かりがある
エチオピアのディキカでは、約330万年前のアファレンシスの子どもの部分骨格、DIK-1-1が見つかっています。頭蓋や歯とともに肩の骨が残ったため、幼い個体の身体を調べる資料になりました。大人のルーシーに加えて、成長途中の個体を比較できることが、この化石の重要な点です。
2012年のグリーンとアレムセゲドの研究は、ディキカの子どもの左右の肩甲骨を、現生人類や類人猿、アファレンシスの成体の断片と比べました。肩甲骨には、ぶら下がる類人猿に共通する特徴が認められ、子どもと成体の資料の類似は、類人猿に近い成長の仕方を示すとしています。
木登りでは、腕を上へ伸ばして身体を引き上げたり、枝をつかんで支えたりします。肩と腕の機能を調べることで、足だけでは分からない移動の能力を検討できます。研究者は肩甲骨の特徴から、アファレンシスの移動にかなりの木登りが含まれていたという仮説を支持しました。地上と樹上を使う割合の復元には、脚や手などの資料も重ねる必要があります。
ルーシーはなぜ有名なのか
アファレンシスを一躍有名にしたのが、1974年にエチオピアのハダールで発見された部分骨格「ルーシー」です。学術的な標本番号はAL 288-1で、年代は約320万年前。全身のさまざまな部位がまとまって残っていたため、頭蓋骨だけでは分からない体つきや歩き方を検討できました。
ルーシーの骨盤は短く幅があり、大腿骨は膝へ向かって内側に傾いています。これは二足歩行の際、体重を支持脚の上へ移しやすくする形です。一方、腕は長く、手足には木登りに適した特徴も残ります。
アファレンシスの脳容量は現代人より小さく、顔つきや腕にも類人猿に似た特徴がありました。一方、ルーシーの骨盤と大腿骨は二足歩行に適しています。脳の大型化に先行して、二足で歩く身体の特徴が発達したことを示す資料です。
一個体の部分骨格を、種全体の資料と照らし合わせる
ルーシーは、約320万年前に生きた一個体の部分骨格です。スミソニアンの展示では、成人女性の個体と説明されています。複数の骨が同じ個体に由来するため、骨盤や腕、脚を別々の化石から寄せ集める場合に比べ、各部位の大きさや形の組み合わせを検討しやすくなります。
一方、アファレンシスの種としての特徴は、ルーシーと別の個体を比べて調べます。スミソニアンは300個体以上に由来する資料が見つかっていると紹介しています。ハダールの別の骨格群、ディキカの子ども、ラエトリの化石など、場所や年代の違う資料が、同じ種の中の変異を考える材料になります。
アファレンシスの生息年代、約385万〜295万年前には約90万年の幅があります。ルーシーはその長い期間の一時点に位置します。化石を比較するときは、同じ種に分類された理由と、標本が生きた年代を併せて読みます。長く生息した種の身体や生活を、個々の標本から積み重ねて調べているのです。
ラエトリの足跡は「歩いた瞬間」を残した
タンザニア北部のラエトリでは、約360万年前の火山灰層に初期人類の足跡が保存されています。代表的なG地点の足跡は、近くの同時期の地層からアファレンシスの化石が見つかることなどから、この種が残した可能性が高いと考えられています。足跡を残した種の特定は、周辺の化石と足の形にもとづく推定です。
G地点の足跡からは、親指がほかの指と同じ方向に並び、かかとで接地して、前足部で地面を蹴る歩き方が読み取れます。足の形と体重のかかり方が、地上の二足歩行を示しています。2021年には、別のA地点の足跡に異なる足の形や歩き方を認めた研究も発表され、同じ地域にいた初期人類の多様性が検討されています。
ルーシーの骨格は、身体が二足歩行にどう適していたかを示します。ラエトリの足跡には、地上を歩いた行動が残りました。骨格の構造と行動の痕跡を合わせることで、当時の歩行像が具体的になります。
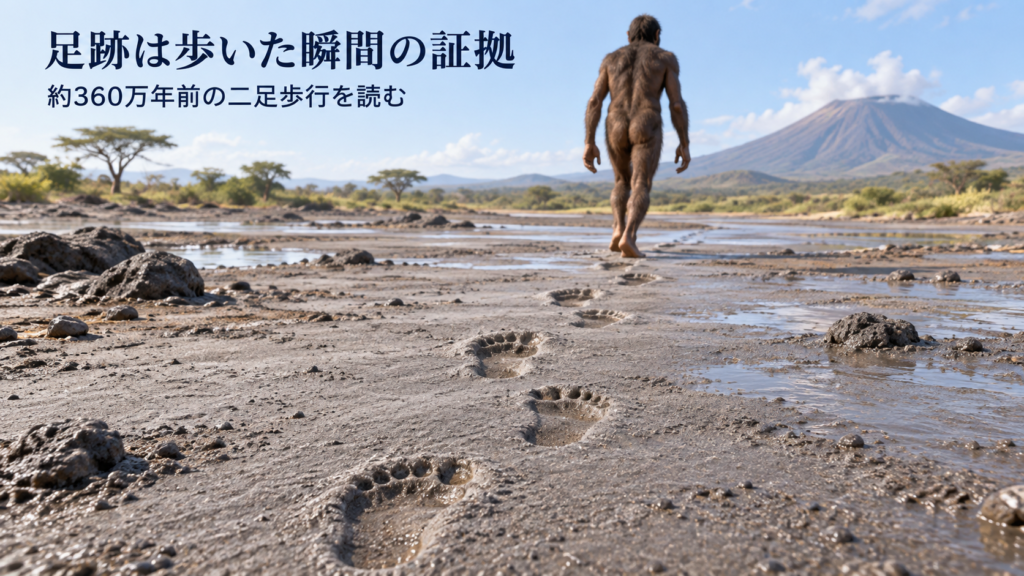
湿った火山灰が、足の形を受け止めた
ラエトリの代表的な足跡は、湿った火山灰の上を歩いたときにでき、その後の火山灰に覆われて残りました。柔らかい地面が足の形を受け止め、後の堆積物がその面を保護したことで、何百万年も前の短い行動が地層の中に保存されたのです。
スミソニアンが紹介する代表的な足跡列は約27メートルにわたり、約70の初期人類の足跡を含みます。一つのくぼみだけを見る場合に比べ、左右の足が交互に並ぶ列からは、歩幅や進んだ方向も検討できます。親指がほかの指と並ぶ形と、かかとから前足部へ移る荷重の痕跡が、二足歩行を具体的に示します。
足跡を調べる際には、足の長さやくぼみの深さに加え、踏んだ地面の硬さや湿り方を考慮します。柔らかい場所では沈み込みが大きくなるため、くぼみの深さをそのまま体重へ置き換えるには条件の検討が必要です。骨格の形と足跡の形を照合することで、足の構造と歩いた動作を別々の資料から探れます。
アファレンシスは何を食べていたのか
歯の形や微細な摩耗、エナメル質の安定同位体から、アファレンシスが植物由来の食物を広く利用していたことが分かっています。歯の形は食物を処理する能力、摩耗は食べ物との接触、炭素同位体は利用した資源の由来を考える手掛かりになります。
スミソニアン国立自然史博物館は、葉、果実、種子、根、木の実などを中心とし、昆虫や小型脊椎動物を食べた可能性も挙げています。さらにエチオピアの歯の安定炭素同位体研究では、森林に多い植物だけでなく、草原性のイネ科・カヤツリグサ科などに由来する資源もかなり利用していた個体がいたことが示されています。
植物を中心に、多様な資源を利用した食生活が考えられます。炭素同位体は資源の幅を示しますが、どの食物をどう採ったかの復元には、歯の摩耗や周辺の動植物なども合わせて調べる必要があります。
エチオピアのディキカでは、約340万年前の動物骨に、石を使った肉や骨髄の処理による傷があるとする報告が出ました。一方、粗い堆積物の中で踏まれてできた傷とする研究もあります。傷を作った原因と、アファレンシスによる肉の処理への結びつけには、議論が残っています。 食性は、歯・同位体・骨の傷を照合して復元します。
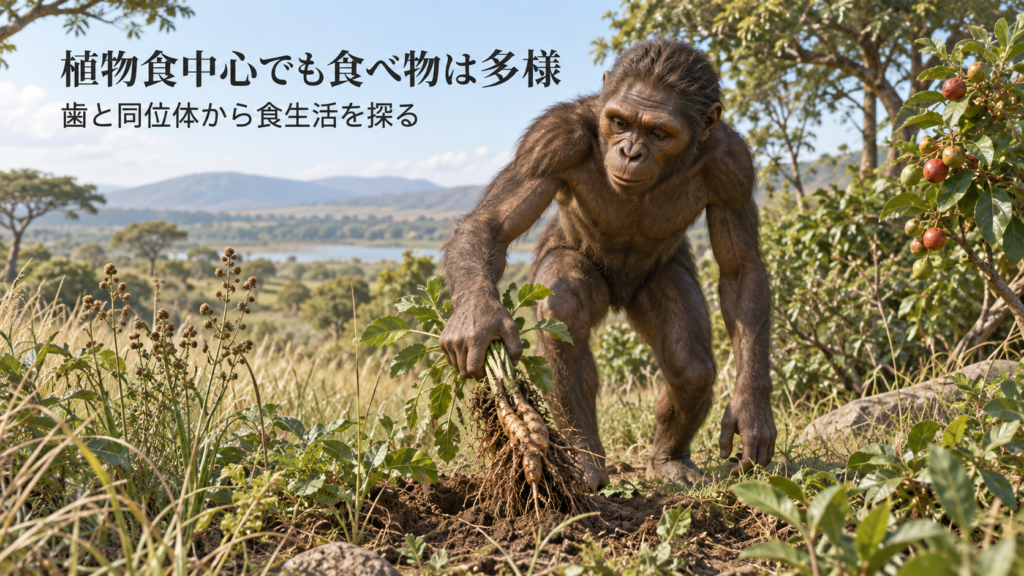
歯の形、摩耗、同位体は食生活の違う面を記録する
大きな歯や厚いエナメル質は、食物をかみ砕く際の力や摩耗に対応する身体の特徴です。歯の表面の細かな傷やくぼみは、実際に食物と接触した痕跡を調べる材料になります。処理できる食物の幅と、食べたものの痕跡を比較することで、食生活の復元を詳しくできます。
安定炭素同位体は、食物のもとになった植物の種類を大きく分ける手掛かりです。植物には、光合成の仕組みが異なるC3植物とC4植物があり、熱帯の樹木や低木の多くはC3、イネ科やカヤツリグサ科の一部はC4です。炭素13と炭素12の比率の違いが、食物を通じて身体に取り込まれ、歯のエナメル質へ記録されます。
ウィンほかの2013年の研究は、ハダールとディキカに由来するアファレンシスの20試料を調べました。C4植物と、乾燥地の多肉植物などに見られるCAM型の光合成に由来する資源の利用が認められ、狭い年代幅の試料の中でも個体ごとの値に大きな違いがありました。種の食性を一つの献立へまとめるより、利用した資源の幅と個体差を見ることが重要だと分かります。
同位体は炭素の由来を示すため、植物を直接食べた場合と、その植物を食べた動物を介して摂取した場合の検討には、ほかの証拠も必要です。食べた植物の部位や採集の仕方は、同位体の数値だけからは特定できません。歯の形や摩耗、同じ地層に残る動植物を併せて、候補となる資源を考えます。
食物の幅を持つことは、生活場所の幅にも関わる
果実、葉、種子、根などは、同じ場所でも得られる量や状態が違います。熟した果実のように柔らかい食物と、硬い部分を含む食物では、採取やかむ作業に求められる条件も変わります。スミソニアンは、歯の摩耗から柔らかい果実の利用を挙げ、歯の形からは硬くもろい食物も処理できたと説明しています。
木を登れる腕と、地上を歩ける脚の組み合わせは、食物を得る場所の違いとも関係します。樹上の資源へ近づくこと、地上で別の採食場所へ移ることを考えると、歩行の能力は食生活の広がりを支える要素になります。骨格から分かる能力と、歯から分かる資源の利用をつなぐことで、移動と食事を同じ暮らしの中で理解できます。
ラマピテクスはなぜ「人類の祖先」から外れたのか
人類進化の研究史には、後から位置づけが大きく変わった化石もあります。その代表がラマピテクスです。20世紀半ばには、インドなどから見つかった中新世の顎や歯の化石が、人類につながる古い類人猿ではないかと考えられました。
しかし、その後により多くの化石が見つかり、分子系統学によって現生類人猿の系統関係も整理されました。1980年代までには、ラマピテクスと呼ばれた化石群はシヴァピテクス類と深く関係し、人類系統よりもオランウータン側の系統に近いとみなされるようになります。
初期の研究は、断片的な顎や歯をもとに系統を推定していました。より多くの化石と分子系統学の成果が加わると、形の似ている部分を評価し直せます。ラマピテクスの位置づけの変化は、資料と分析方法の充実によって、人類進化の系統関係が見直されてきたことを示しています。
霊長類の起源を探る化石記録と年代推定
霊長類の起源の年代には、化石記録と分子時計による推定の間に幅があります。タヴァレほかの2002年の研究は、初期始新世の約5500万年前に確実な霊長類化石が現れる一方、当時の分子推定には白亜紀までさかのぼるものがあると説明しました。スミソニアンの系統図は、霊長類の系統を約6500万年前付近から示しています。
化石が現れる最古の年代は、標本と地層から確認できる時期です。分子時計は遺伝的な違いなどから分岐時期を推定します。両者の結果を比べる際には、推定方法と対象とする集団の範囲を確かめます。
霊長類全体の起源は数千万年前、人類とチンパンジーの系統の分岐は約800万〜600万年前へ置けます。対象とする系統の範囲を見てから年代を読むと、長い進化史の時間軸を整理できます。
「猿人」という言葉と、現在の人類進化研究の見方
世界史の学習では、猿人・原人・旧人・新人という区分が使われます。大きな流れをつかむための古典的な呼び方です。現代の古人類学は、複数の系統が枝分かれする系統樹をもとに、種どうしの関係を研究します。アウストラロピテクス類にも複数の種があり、同じ時代に生息した種どうしの関係には未解明の点があります。
学習では、「猿人」を初期人類を大づかみに示す呼び方として押さえたうえで、種名・年代・化石の特徴を確かめましょう。アファレンシスとアナメンシスを具体的に比べると、各系統の共通点と違いが見えてきます。
骨・足跡・歯は、それぞれ別の問いに答える
骨盤や大腿骨は「どんな姿勢や移動に適した身体だったか」、足跡は「そのときどう歩いたか」、歯の摩耗や炭素同位体は「どんな食物や資源を利用したか」を調べる資料です。資料ごとに、答えられる問いが異なります。
古人類学では、異なる証拠を重ねて生活像を絞り込みます。骨の形は、現生動物との比較などから機能を検討します。足跡の形を読む際には、地面の状態と保存のされ方も確かめます。資料が残った条件も、復元の重要な要素です。
ルーシーの骨格とラエトリの代表的な足跡は、二足歩行を異なる資料から考える組み合わせです。さらに歯の研究を加えると、食生活の一部も分かります。身体の構造・行動・食物の利用という三つの問いを立てると、各資料の役割を追いやすくなります。
年代を一本の線にすると、人類進化が見えやすい
| おおよその年代 | 出来事・化石 | 読み取れること |
|---|---|---|
| 約800万〜600万年前 | 人類とチンパンジーの系統が共通祖先から分岐したと推定 | 人類系統の出発点に近い時期 |
| 約700万〜600万年前 | サヘラントロプス・チャデンシス | 二足歩行と樹上活動を組み合わせていた可能性 |
| 約420万〜380万年前 | アウストラロピテクス・アナメンシス | 脛骨などに日常的な二足歩行を示す特徴 |
| 約385万〜295万年前 | アウストラロピテクス・アファレンシス | 二足歩行と木登りの特徴を併せ持つ |
| 約360万年前 | ラエトリの足跡 | 地上を二足で歩いた行動の直接的な痕跡 |
| 約320万年前 | ルーシー | 骨盤・大腿骨などから二足歩行の身体構造を確認 |
約700万〜600万年前のサヘラントロプスには歩行様式をめぐる議論があり、後のアウストラロピテクス類では、骨や足跡から二足歩行を詳しく検討できます。化石が少ない時期もあるため、進化の過程は標本ごとの年代と特徴を積み重ねて調べられています。
二つの問題をどう覚えるか
問1の「直立二足歩行」は、人類系統の重要な身体的特徴です。問2の「アウストラロピテクス・アファレンシス」は、二足歩行に適した骨格と樹上活動に向く特徴を併せ持った代表的な種です。ルーシーの骨とラエトリの足跡を手掛かりに、その歩行を説明できます。
復習では、年代と証拠の種類を次のようにつなげてみましょう。
- 約700万年前前後:最古級の化石で二足移動の可能性が研究され、解釈には議論が続く。
- 約385万〜295万年前:アファレンシス。地上を二足で歩き、木登りの能力も残す。
- 約360万年前:ラエトリの足跡。実際の歩行行動が残る。
- 約320万年前:ルーシー。骨格から二足歩行の身体構造が分かる。
最初期の化石研究、アファレンシスの身体、足跡に残る行動、ルーシーの骨格を、それぞれの年代へ置きます。何が歩行の証拠になるかを説明できれば、設問の答えにも理由を添えられます。
まとめ|人類の最初の大きな特徴は、大きな脳より先に現れた二足歩行
問1の答えは直立二足歩行、問2はアウストラロピテクス・アファレンシスです。アファレンシスは約385万〜295万年前の東アフリカに生息し、ルーシーの骨格やラエトリの足跡から、二足歩行をしていたことが具体的に分かります。
初期人類の歩行は、限られた化石をもとに研究されています。木登りと地上歩行に適した特徴が組み合わさり、各系統で身体が変化しました。アファレンシスの食性には、植物を中心とする幅広い資源の利用が考えられ、動物骨の傷の解釈には議論が残っています。
復習では、「骨・足跡・歯がそれぞれ何を教えてくれるか」を自分の言葉で説明してみてください。年代と資料を結びつけると、人類進化を証拠からたどることができます。
参考資料
- スミソニアン国立自然史博物館 人類起源プログラム「アウストラロピテクス・アファレンシス」 — 生息年代、分布、二足歩行、食性の概要を確認。
- スミソニアン国立自然史博物館 人類起源プログラム「AL 288-1」 — ルーシーの年代、発見地、骨格と移動様式を確認。
- スミソニアン国立自然史博物館 人類起源プログラム「ラエトリの足跡」 — 約360万年前の足跡と歩行特徴を確認。
- スミソニアン国立自然史博物館 人類起源プログラム「直立歩行」 — 初期人類の二足歩行が段階的に変化したことを確認。
- スミソニアン国立自然史博物館 人類起源プログラム「遺伝学」 — 人類とチンパンジー系統の分岐年代の概略を確認。
- ダヴェルほか「チャドの後期中新世人類における二足歩行の体幹以外の骨格証拠」 — サヘラントロプスの大腿骨・尺骨と移動様式を確認。
- ウィンほか「エチオピア、ハダール層のアウストラロピテクス・アファレンシスの食性」 — 安定炭素同位体から食性の幅を確認。
- アンドリュース、クローニン「シヴァピテクスとラマピテクスの関係とオランウータンの進化」 — ラマピテクスとシヴァピテクス、オランウータン系統との関係を確認。
- タヴァレほか「化石記録を用いた現生霊長類の最終共通祖先年代の推定」 — 霊長類起源の推定方法と化石記録の年代差を確認。
- マックス・プランク協会「What about bipedalism in Sahelanthropus?」2024年 — 大腿骨の再分析と歩行解釈の議論。
- ウィリアムズほか「Earliest evidence of hominin bipedalism in Sahelanthropus tchadensis」2026年 — 骨の比率と股関節・膝に関わる特徴による二足歩行説。
- マクナットほか「Footprint evidence of early hominin locomotor diversity at Laetoli, Tanzania」2021年 — G・S地点の足跡の帰属と、A地点の歩行・足の形の違い。
- マクフェロンほか「Evidence for stone-tool-assisted consumption of animal tissues before 3.39 million years ago at Dikika, Ethiopia」2010年 — ディキカの動物骨の傷と石による処理説。
- ドミンゲス=ロドリゴほか「Reply to McPherron et al.: Doubting Dikika is about data, not paradigms」2011年 — 骨の傷を踏みつけとする解釈と資料上の課題。
- スミソニアン国立自然史博物館「Australopithecus anamensis」 — 年代と脛骨の二足歩行の特徴。
- Wiseman(2023)ルーシーの骨盤・下肢の筋肉復元 — 36筋のモデルと直立姿勢の可能性。効率的歩行の確定とは区別。
- Green・Alemseged(2012)アファレンシスの肩甲骨と木登り — ディキカ幼体と成体・現生霊長類の比較。
- スミソニアン「DIK-1-1」 — ディキカの子どもの年代と部分骨格。
- Klein(2013)Stable carbon isotopes and human evolution — 安定炭素同位体の食物由来とエナメル質による記録。