※この記事にはアフィリエイト広告を含みます。
問1 約11万5000年前ごろから1万1700年前ごろまで続いた最終氷期を、アルプス地方の古典的な氷期区分では何と呼びますか。
問2 更新世の日本列島に生息し、本州・四国・九州を中心に化石が見つかっている代表的な大型のゾウの名称を答えなさい。
問3 最終氷期最盛期ごろ、北海道から東北地方を中心に広がっていた寒冷地型の亜寒帯針葉樹林を、一般に何と呼びますか。
答えと解説
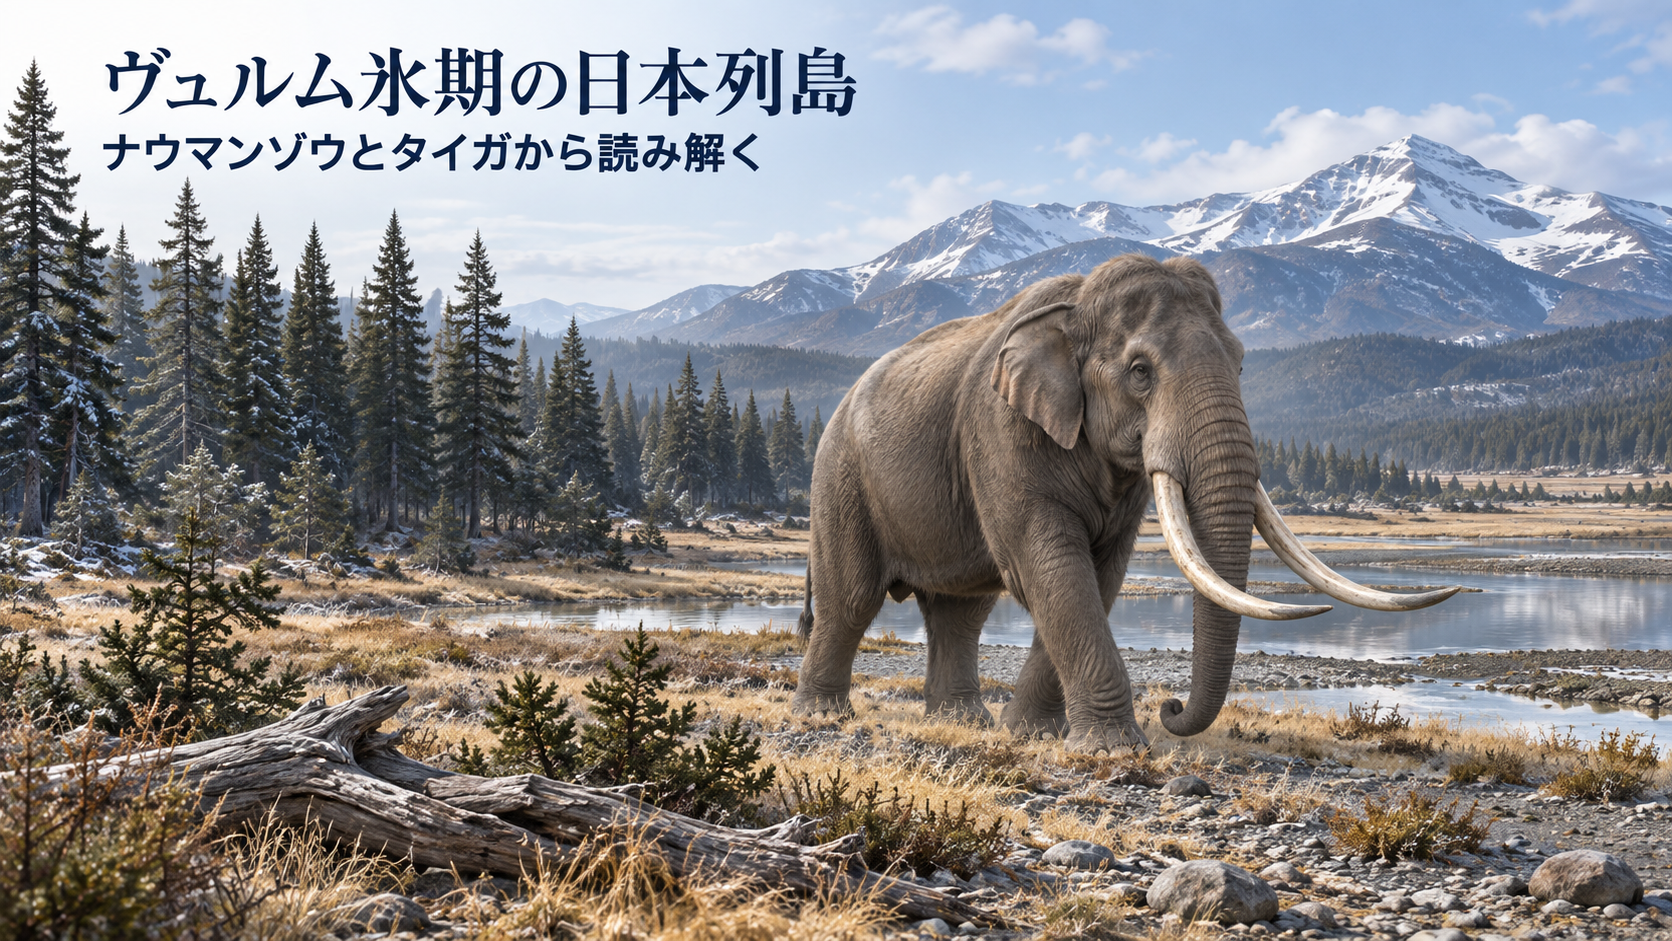
答えは、問1がヴュルム氷期、問2がナウマンゾウ、問3がタイガ(亜寒帯針葉樹林)です。 時代・動物・植生を、気候と海峡の変化につなげて考えられる三つの用語です。
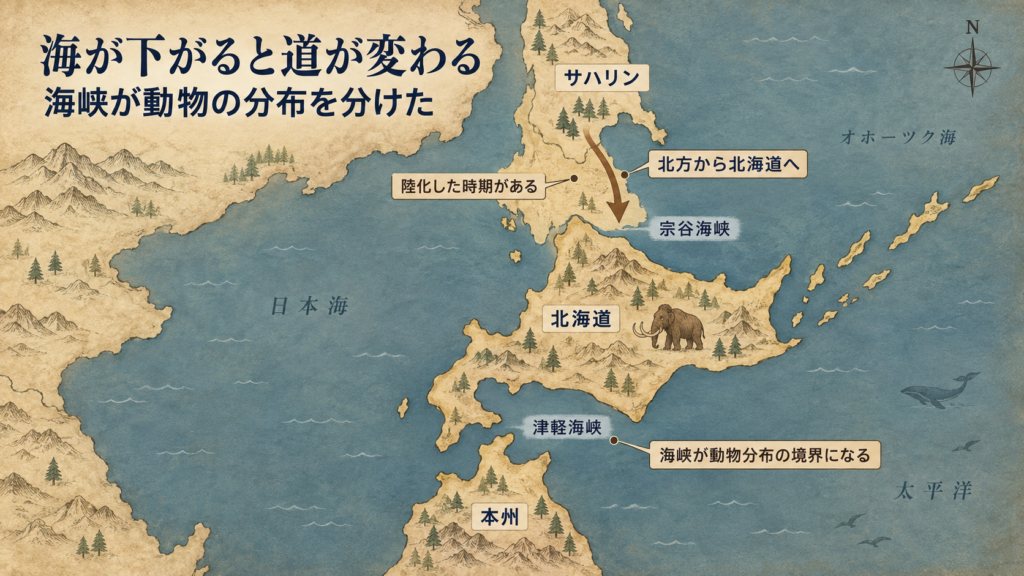
約2万年前の日本列島では、海岸線が今より沖へ張り出していました。世界規模で巨大な氷床が発達し、海水面が現在より100m以上低かったためです。北海道とサハリンの間には陸上を移動できる時期があり、本州・四国・九州と大陸の間には、海峡による移動の障壁がありました。つながり方は、海峡と時期ごとに確かめます。
そして陸上では、寒冷化に合わせて森林の顔ぶれが変わりました。北日本には亜寒帯針葉樹林が広がり、動物の分布も時期によって変わりました。気候、海面、動物、植物を同じ風景の中に置くと、三問の答えが一つの物語として見えてきます。
深掘り|時代・動物・植生をつなぐ
| 問い | 答え | 何を表すか |
|---|---|---|
| 問1 | ヴュルム氷期 | アルプス地方で用いられた最終氷期の古典的名称 |
| 問2 | ナウマンゾウ | 更新世の日本列島を代表する大型哺乳類 |
| 問3 | タイガ(亜寒帯針葉樹林) | 寒冷な地域に広がる針葉樹中心の森林 |
ヴュルム氷期は「時代の呼び名」、ナウマンゾウは「動物」、タイガは「植生」です。同じ時代の気候や海岸線を調べることは、動物の移動や、生息できる森林を考える手掛かりになります。
ヴュルム氷期とは何か
最終氷期は、最後の間氷期が終わった約11万5000年前ごろから、現在の温暖な完新世が始まる約1万1700年前までの寒冷な時期を指します。そのなかでも氷床が特に大きく発達した時期が、最終氷期最盛期です。研究分野によって幅がありますが、おおむね約2万6000〜1万9000年前ごろがその中心に置かれます。
アルプス地方では、第四紀の氷期をギュンツ、ミンデル、リス、ヴュルムなどの名で区分してきました。その最後に当たるのがヴュルム氷期です。北アメリカでは、最後の氷期にウィスコンシン氷期という名称が使われます。地球規模の寒冷期に対応する、各地域の氷河の記録に基づいた区分です。地域間の年代を比較するときは、境界の取り方も照合します。
日本では、日高山脈や日本アルプスなどの高山に氷河が発達した場所がありました。列島の大部分では、寒冷で乾燥した環境のもと、森林や草原が広がっていました。氷河や森林の分布には、地形、標高、降水量などの地域差が反映されます。
最終氷期最盛期には海が大きく後退した
最終氷期最盛期には、大量の水が陸上の氷床として蓄えられました。気候変動に関する政府間パネルの評価では、全球平均海面は現在より約125〜134m低かったと推定されています。日本列島の周囲でも浅い海底が陸化し、海岸線は現在より大きく外側へ移りました。
海面低下による陸化は、海峡の水深と当時の環境によって異なります。宗谷海峡が陸化して北海道とサハリンがつながった時期がある一方、津軽海峡は動物の分布を分ける障壁として働きました。九州と朝鮮半島の間の対馬海峡についても、陸橋の成立時期や海峡環境が研究されています。
寒冷な環境に適応したケナガマンモスは、シベリアからサハリンを経て北海道へ南下したと考えられています。本州・四国・九州では、ナウマンゾウの化石が広く見つかります。津軽海峡をはさんだ動物相の違いは、陸地がつながった時期と、動物が生息した時期を調べる資料です。
海面が下がった量と、浅い海底の広さを組み合わせる
同じ海面低下でも、海岸線が移る距離は場所によって違います。海底の傾斜が緩い場所では、浅い海が広い範囲で陸になります。海岸から急に深くなる場所では、海面が下がっても海岸線の移動は比較的小さくなります。海面の高さと海底地形を組み合わせることが、当時の陸地を考える基礎です。
海峡の状態も、最も浅い部分の深さや、地形の変化に関わります。宗谷海峡、津軽海峡、対馬海峡をそれぞれ確認するのは、このためです。動物の化石がどちら側に現れるか、いつ現れるかという記録を、海峡の復元と照合すると、移動経路を検討できます。
人々の移動には、陸化した場所を歩くことと、水路を渡ることの違いが関わります。また、現在は海底になった場所も、当時は陸上の活動場所になり得ました。現在見つかる陸上の遺跡と、変わった海岸線の位置関係を考えることで、旧石器時代の暮らしをより広い地形の中へ置けます。
ナウマンゾウの渡来は中期更新世へさかのぼる
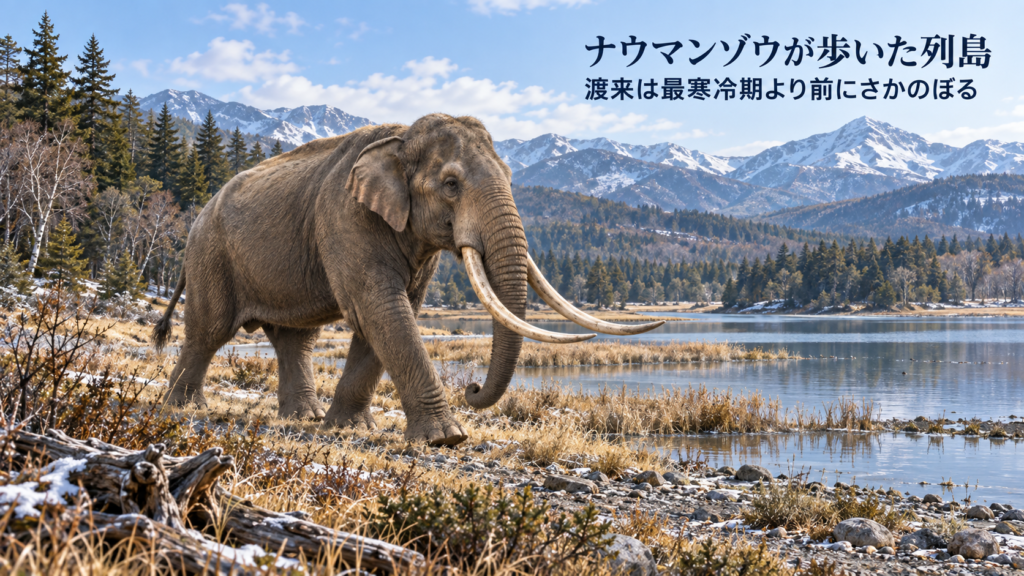
ナウマンゾウは、日本の更新世を代表する大型哺乳類です。化石は本州・四国・九州を中心に広く見つかり、長野県の野尻湖はその研究でよく知られています。体高は現生のアジアゾウに近い規模とされ、雄では長く湾曲した牙が目立ちました。
ナウマンゾウの系統が大陸側から日本列島へ入った時期は、中期更新世へさかのぼると考えられています。最終氷期最盛期よりも、ずっと古い時期です。その後、日本列島で長く生息し、後期更新世の人類とも同じ時代を過ごしました。化石が最初に現れる地層と、陸橋が成立した時期を比較することで、渡来の時期を探ります。
野尻湖では、ナウマンゾウやヤベオオツノジカの化石とともに、旧石器時代の遺物が見つかっています。海峡の状態、気候、植生が変わる長い時間のなかで、動物相も変化しました。各遺跡の化石と地層は、動物と人類の活動した時期を重ねて考える資料です。
ナウマンゾウの絶滅年代も再検討されています。2026年の研究は、化石の不純物を減らして年代を再測定し、統計的に約3万4100〜3万2700年前の絶滅を推定しました。従来の約2万4000年前という推定より古く、最盛期に至る前の気候変動を重視する結果です。著者らは、人類の影響を限定的と解釈する一方、追加の測定が必要だとしています。生息期間と原因は、新しい年代データから評価される課題です。
年代を再測定するため、骨に混じった新しい炭素を減らす
放射性炭素年代測定では、試料に残る炭素14の量を調べます。生物が死んだ後、炭素14は時間とともに減ります。古い骨へ後から新しい炭素が混じると、残る炭素14が多く見え、実際より若い年代が得られる場合があります。古い化石ほど、試料の処理が重要になる理由です。
2026年のナウマンゾウ研究は、骨のコラーゲンを抽出し、限外ろ過によって長い分子を選ぶ処理を使いました。不純物の影響を減らして年代を再測定する方法です。得られた年代と統計的な検討から、絶滅時期の推定が古くなりました。化石が増えることに加え、同じ資料の測り方の改善も、生息期間の理解を変えます。
絶滅時期が変わると、人類と同じ時代に生息した期間や、重なった気候変動の候補も変わります。研究者はこれらの関係から、気候変動を重視する解釈を示しました。絶滅を説明する際には、年代データを起点に、植生と動物の分布、人類の活動を照合します。
マンモスとナウマンゾウの分布・年代を比べる
北海道では、最終氷期後半にケナガマンモスが見つかります。北方の大陸と北海道がサハリン経由でつながったことで、寒冷な草原に適応した動物が南下できたと考えられています。
ケナガマンモスの確実な陸上化石は本州では知られていません。これに対して、本州ではナウマンゾウの化石が各地から見つかります。両者の分布の境目として意識されるのが津軽海峡です。
北海道の湧別町からは、ナウマンゾウの臼歯も見つかっています。2004年の報告は、約3万年前という未補正の放射性炭素年代を示し、植生の変化に応じて二種類のゾウが時期を変えて分布した可能性を論じました。化石の比較では、測定方法と暦年への補正の有無も確かめます。渡来の経路や時期は、年代・植生・海峡環境を合わせて検討します。
タイガはどんな森だったのか
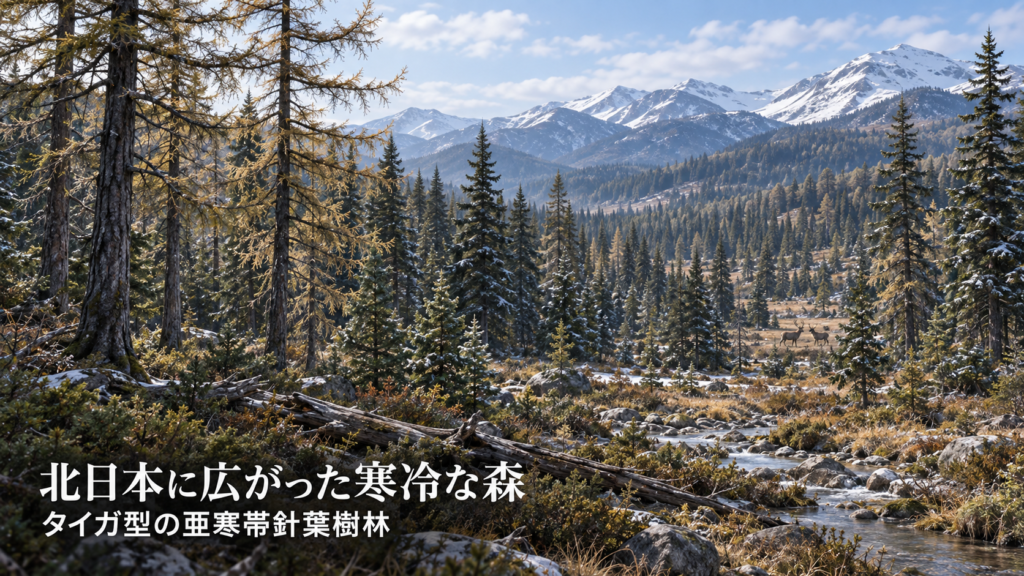
タイガは、亜寒帯に広がる針葉樹中心の森林を指す言葉です。現在のシベリアやカナダの北方林が、その代表例です。最終氷期の日本列島の植生は、当時の花粉化石や植物化石から復元します。
花粉化石や植物化石の研究では、最終氷期最盛期ごろの北海道から東北地方に、カラマツ属、トウヒ属、モミ属など寒冷地型の針葉樹を中心とする森林が広く分布したことが示されています。東日本の一部では亜寒帯性針葉樹林が優勢になり、標高の高い地域では森林限界も現在より低くなりました。
四国や九州を含む西南日本では、モミ属やツガ属などの針葉樹と、落葉広葉樹が混じる森林が成立した地域もあります。寒冷化の影響には、緯度、標高、降水量、海流の違いが反映されました。北日本にも森林と草原が組み合わさった環境があり、植生は地域内でも変化します。
問3では「タイガ(亜寒帯針葉樹林)」と答えられます。その分布を説明する際は、北日本に寒冷地型の針葉樹林が広がり、西日本では針広混交林も見られたという地域差を添えると、植生の姿を捉えられます。
花粉の外側の壁が、過去の森の記録になる
花粉は、植物の種類によって形や表面の模様が異なります。国立科学博物館は、一般に科や属の仲間を判別できると説明しています。湖底や海底など酸素の少ない場所に堆積すると、外側の丈夫な壁が分解されにくく、微化石として何万年も残ります。
堆積物から取り出した花粉を顕微鏡で調べ、どの仲間の植物がどれだけ含まれるかを比較します。異なる深さの試料を年代と対応させれば、植物の組み合わせが時間とともに変わった記録をたどれます。現在の植生を見られない時代の森を、植物が残した小さな資料から探る方法です。
花粉の記録は、同じ時期の複数の場所を比較することでも役立ちます。北と南、低地と山地で含まれる仲間が違えば、その時期の地域差を検討できます。木材や種子などの植物遺体も併せ、広い分布の傾向と、その場所に残った植物の情報を重ねます。
四万年前、二万年前、一万四千年前では、森の組み合わせが違う
大井信夫による2016年の植生史研究は、花粉資料を九つの時期へまとめ、主要な25種類の樹木の花粉を分析しました。約4万年前、約2万年前、約1万4000年前などの資料群を比べることで、最終氷期内の変化と、氷期後の変化を分けて調べています。
約4万年前の資料群では、中部から西日本でスギや落葉広葉樹の森林、北日本や山地で常緑のマツ科の森林が優勢でした。約2万年前には、北海道で落葉針葉樹のカラマツ属が優勢となり、ほかの地域で常緑のマツ科の森林が広がりました。中部から西日本の低地には、落葉広葉樹の森林も残っていました。
約1万4000〜1万2000年前の資料群では、カバノキ属の森林が北日本や山地で広がります。研究は、森林の変化に、すでにその地域にあった樹種の増減が大きく関わったとしています。森の外観が変わる過程を、樹木の分布と優占の程度の両方から考えられます。
寒冷化は森と動物の居場所を同時に変えた
気温の低下は、各樹種が生育しやすい場所と、その優占の程度を変えます。花粉分析では、分布の拡大・縮小に加えて、その地域に残っていた樹種の増減も調べます。森が変われば、葉や枝、草を食べる大型哺乳類の餌場も変わるため、植生は動物の生息範囲を左右する重要な条件です。
北日本では、寒冷・乾燥化のもとで針葉樹林や開けた環境が広がりました。北方系動物の移動には、陸橋とともに、到達先で食物を得られる環境が必要です。本州では、ナウマンゾウやヤベオオツノジカなどの化石と人類の遺物を、年代ごとに比較して当時の暮らしを探ります。
やがて約1万数千年前から温暖化が進むと、東日本ではカバノキ属を中心とする林を経て、コナラ類やブナなどの落葉広葉樹が分布を広げます。九州南部ではさらに暖温帯性の常緑広葉樹が広がっていきました。森の交代は、氷期が終わったという地質学的な区切りを、目に見える風景の変化へ置き換えてくれます。
暖地性の樹木が残ったレフュージア
スダジイの遺伝情報を使った研究は、最終氷期最寒冷期に、九州南部や南西諸島に加え、日本海側や東日本の太平洋沿岸にも生き残った集団があった可能性を示しました。こうした生物が厳しい時代をしのいだ場所を、レフュージア(逃避地)と呼びます。
谷、海岸、斜面の向きなどによって、局地的な環境は異なります。寒冷期にも、生育条件の合う場所に小さな集団が残り、氷期後の温暖化に伴って個体数を増やしたと考えられます。地域に残る遺伝的な違いも、この過去の分布を調べる手掛かりです。
現在の遺伝情報から、小さな生き残り集団を探る
花粉資料に加え、現在生きている樹木の遺伝的な違いも、過去の分布を調べる材料になります。スダジイの2018年の研究は、個体群の分岐と個体数の変化について複数のモデルを比較しました。琉球、西日本、日本海、東日本の四つのグループが、最寒冷期以前に成立していたことを示す結果でした。
研究者は、四つの地域でそれぞれ生き残り、温暖化の後に個体数を増やしたと考えています。花粉の記録が少ない地域でも、古い系統の個体群が残っていた可能性を調べられる点が重要です。これはスダジイを対象にした復元で、ほかの樹種の分布はそれぞれの資料で検討します。
「リス氷期」「エム間氷期」「ヴュルム氷期」はどう並ぶか
アルプス地方の古典的区分では、ヴュルム氷期の前にリス氷期があり、その間に温暖なリス=ヴュルム間氷期が置かれます。北西ヨーロッパでは、最後の間氷期をエム間氷期と呼ぶことが多く、およそ13万〜11万5000年前ごろに当たります。
古い文献では「古ヴュルム」「主ヴュルム」といった細分が見られることもあります。ただ、現在の研究では、海底堆積物や氷床コアに残された酸素同位体の変化を使う海洋酸素同位体ステージ、略してエムアイエスによる区分がよく用いられます。
最終氷期はおおむねエムアイエス5dからエムアイエス2にまたがり、最終氷期最盛期はエムアイエス2に位置します。古典的なヴュルムという地域区分と、エムアイエスによる広域の比較を対応させると、異なる地域の記録を同じ年代へ置けます。
ヨーロッパではマンモス・ステップが広がった
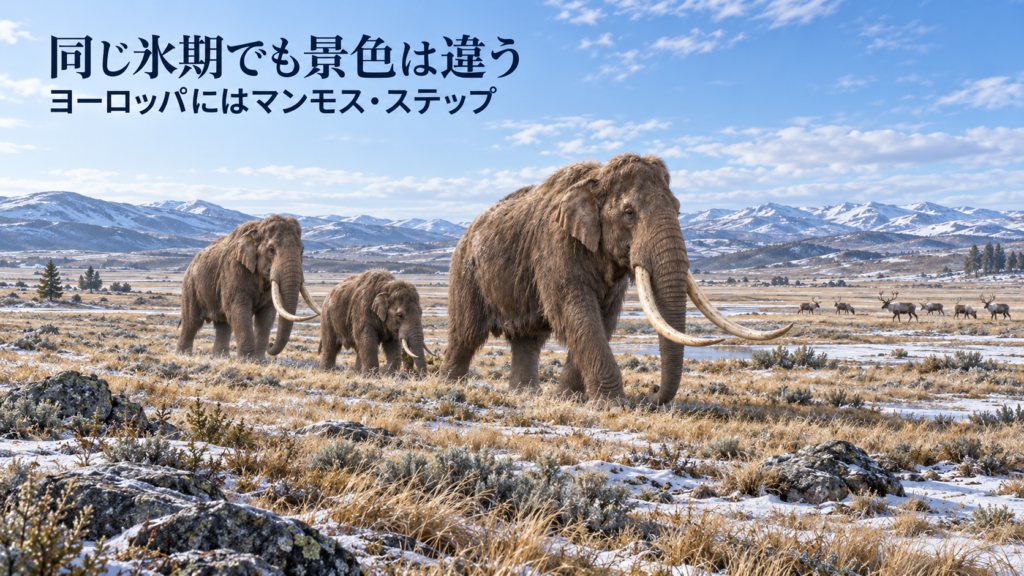
同じ最終氷期でも、ヨーロッパ北部からシベリアにかけては、森林だけでなく、寒冷で乾燥した草原性の環境が広く発達しました。こうした環境はマンモス・ステップと呼ばれます。
そこではマンモス、ケサイ、トナカイ、バイソン類などの大型草食獣が生息し、それを追う肉食獣や人類もいました。大型哺乳類が豊富だった背景には、低温・乾燥、土壌、季節性、草本植物の生産など複数の環境条件が関わります。古代DNAの研究からは、イネ科の草に加え、さまざまな広葉草本が植生や動物の食物を支えていたことも報告されています。
日本列島のタイガとヨーロッパのマンモス・ステップを比べると、森林と開けた草原の地域差が分かります。同じ寒冷期でも、地域ごとに海と陸の配置、降水量、植物相が違い、その違いが動物相にも反映されました。
現在より5〜7℃低い世界を、東京と札幌の差で考える
森林総合研究所は、最終氷期最寒冷期の日本の平均気温を現在よりおよそ5〜7℃低いと説明しています。この数字は地域差を含む目安ですが、風景を想像する手がかりになります。同研究所は、現在の東京の年平均気温を札幌に近い気候へ置き換える例で説明しています。
年平均気温に5〜7℃の差が続けば、森林をつくる樹種、積雪、凍結する地面の範囲、動物が得られる餌が変わります。植物は動物の食料であり、身を隠す場所や移動しやすさにも関係します。気温の低下は、森と動物と人間の暮らしを組み替える条件でした。
当時の人類は、約3万8000年前までには日本列島へ到達していたと考えられています。つまり後期旧石器時代の人々は、現在とは異なる海岸線と森林、大型哺乳類のいる環境で暮らしていました。最終氷期の気候と自然環境は、旧石器時代の人々が利用できる食物や、移動の条件を考える手掛かりです。
森の違いは、食物と移動の条件にもなる
針葉樹が多い森林、落葉広葉樹が多い森林、開けた草原では、得られる葉や枝、草の組み合わせが違います。大型草食獣の生息を考える際には、移動できる地形と、その先で得られる食物を併せて検討します。海峡が通れることと、生息に適した場所が続くことは、移動の違う条件です。
人々にとっても、森林は食物や木材を得る場所であり、動物を探す場所になります。樹木が密な場所と開けた場所では見通しや移動しやすさが変わり、川や湖の位置も活動に関わります。遺跡の石器や動物の骨を植生の記録と重ねることで、活動した場所の条件を具体的に考えられます。
年平均気温の低下に加え、季節ごとの寒さや積雪、地面の状態が移動と資源の利用に関わります。「タイガ」という森林の呼び名を、樹種、地形、季節、食物の条件へ分けて見ると、その環境での暮らしを考えやすくなります。
海面低下は日本海の環境まで変えた
海峡が浅く狭くなると、外海から日本海へ入る海水の量や性質が変わります。約2万年前の日本海では、海面低下に伴って対馬海峡からの海水流入が弱まり、表層の水温や塩分も現在とは異なっていました。海面低下は、陸地の面積とともに、海の環境も変えたのです。
2012年の海底堆積物の研究は、日本海南部の最終氷期最盛期の表層を、低温・低塩分の環境と推定しました。水温の推定には分析指標による違いもあり、同研究は有孔虫や珪藻などを照合しています。陸地の拡大、海流、水温、海の生態系を合わせて見ると、海面低下の影響を広く捉えられます。
最終氷期の日本列島では、海峡、海流、標高、緯度が重なって地域差を作りました。動物の移動を考える際は海峡と生息環境を、森林を考える際は気温と降水量などを照合します。陸と海を結び付けることで、地域ごとの風景を説明できます。
有孔虫と珪藻は、海の表層環境を記録する
海底の堆積物にも、過去の環境を調べる微化石が残ります。2012年の日本海の研究は、日本海南部の四本の堆積物コアに含まれる浮遊性有孔虫を調べ、現在の北部の表層堆積物と比較しました。特定の種類の左巻きの殻の割合を、表層の環境を推定する指標として用いています。
研究は、最盛期の日本海南部の表層を、現在の日本海北部に相当する低温の環境と推定しました。5月の水温では、現在の約15〜16℃に対し約3〜6℃という評価です。塩分の推定には殻の酸素同位体を使い、珪藻の組み合わせも低温・低塩分の復元を支持しました。
これは南部の表層と特定の季節を対象にした推定です。日本海全体の年間水温を一つの数値に置き換えず、調べた場所と指標を対応させます。陸上の花粉と海底の微化石を並べることで、森と海が同じ寒冷期にどう変わったかを別々の資料から検討できます。
三問を物語として覚える
最後に、三つの答えを順番でつないでみます。
- 最後の大きな寒冷期が最終氷期で、アルプス地方ではヴュルム氷期と呼ばれる。
- 最終氷期最盛期には全球平均海面が大きく下がり、日本列島周辺の海岸線も現在とは異なる形になった。
- 北海道はサハリンを通じて北方大陸とつながる時期があり、マンモスなど北方系動物が入った。
- 本州・四国・九州では、より古い時期に大陸から渡来した系統をもつナウマンゾウが代表的な大型哺乳類だった。
- 寒冷化に伴い、北海道から東北地方を中心にタイガ型の亜寒帯針葉樹林が広がった。
寒冷化による氷床の拡大と海面低下は、海峡の環境や動物の移動経路を変えました。寒冷化は植生にも作用し、到達先での食物や生息環境を変えます。ナウマンゾウの移入は中期更新世へさかのぼり、最終氷期内でも動物の生息時期は異なります。年代・海峡・植生を合わせると、それぞれの動物が暮らした条件を考えられます。
まとめ
問1のヴュルム氷期は、アルプス地方で使われた最終氷期の名称です。問2のナウマンゾウは更新世の日本列島を代表する大型哺乳類で、中期更新世に渡来したと考えられています。絶滅年代には、2026年の再測定による新しい推定も報告されています。問3のタイガは北日本に広がった亜寒帯針葉樹林を表し、西日本では針葉樹と広葉樹が混じる地域もありました。
三つを「時代・動物・植生」と分けたうえで、海面低下と海峡の変化を間に置くと、最終氷期の日本列島を一つの風景として説明できます。表を閉じて、ヴュルム氷期、ナウマンゾウ、タイガの三語をこの順に自分の言葉でつないでみてください。
参考資料
- 気候変動に関する政府間パネル 第6次評価報告書 第1作業部会 第9章 — 最終氷期最盛期の全球平均海面が現在より約125〜134m低かったことを確認。
- 国立科学博物館「The Earth 30,000 Years Ago」 — 約3万年前も日本列島の多くが海に囲まれていたという説明を確認。
- 日本第四紀学会『第四紀における日本列島への哺乳類の移動』 — ナウマンゾウなど大型哺乳類の移入時期と列島の隔離について確認。
- 日本第四紀学会『北の陸橋』 — 最終氷期の北海道・サハリン間の陸橋について確認。
- 森林総合研究所 多摩森林科学園 年報 — 最終氷期最盛期の亜寒帯針葉樹林の分布変化について確認。
- 日本植生史学会『花粉分析に基づいた日本における最終氷期以降の植生史』 — 日本列島の最終氷期以降の植生変遷を確認。
- 森林総合研究所「日本の常緑広葉樹は最終氷期をどこで生き延びたのか」 — 最終氷期最寒冷期の気温差とスダジイの逃避地について確認。
- 日本地質学会『最終氷期最盛期前後の日本海の表層環境』 — 日本海南部の表層水温・塩分変化について確認。
- GeoSphere Austria「Quartär」 — ヴュルム氷期の年代とアルプスの氷河区分。
- Clarkほか「The last glacial maximum」2009年 — 最盛期の氷床と海面の年代を比較した原著研究。
- 高橋啓一ほか「北海道から新しく発見されたナウマンゾウ標本とその意義」2004年 — 未補正年代と二種のゾウの分布の検討。
- 日下宗一郎ほか「A refined chronology of the Naumann’s elephant」2026年 — 再測定に基づく絶滅年代と要因の推定。
- 東海大学・東京大学ほか「日本列島のナウマンゾウ、絶滅年代は従来説より1万年古かった」2026年 — 上記研究の方法・結果・今後の課題。
- Willerslevほか「Fifty thousand years of Arctic vegetation and megafaunal diet」2014年 — 草原の植生と大型草食獣の食物の古代DNA研究。
- 信濃町「指定文化財」 — 野尻湖の大型哺乳類化石と旧石器時代の遺物。
- 国立科学博物館 微化石データベース「花粉」 — 花粉の形態と壁、湖底・海底での保存と植生の復元。